
 抗体
 试剂盒
 多肽
 蛋白
 组织芯片


 时间:2026-09-01
 来源:本站编辑
 浏览次数:131次
 分享:


一、为什么跨膜蛋白这么难搞?
如果你在实验室做过跨膜蛋白相关的研究,大概率有过被折磨到怀疑人生的经历。跨膜蛋白是蛋白纯化和结构生物学领域公认最难的蛋白类别,没有之一。别的蛋白搞不定的,它全占了:表达量低、不溶、容易聚集、需要去垢剂、结构复杂、还容易失活。可以说,跨膜蛋白的研究集合了蛋白工程中最棘手的问题。
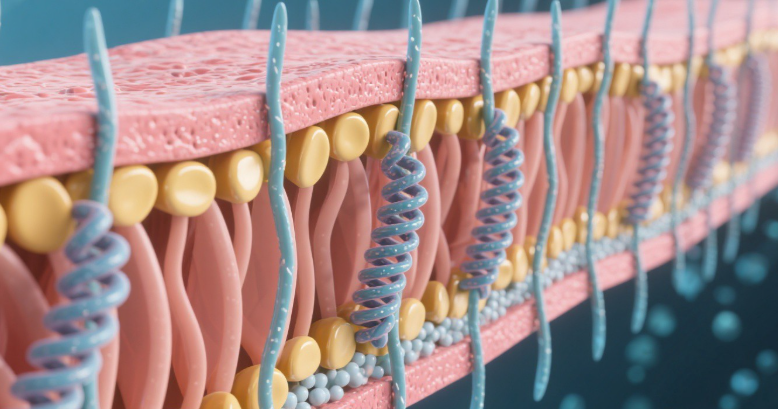
跨膜蛋白为什么这么难?这得从它的本性说起。跨膜蛋白,也叫整合膜蛋白,是镶嵌在细胞膜磷脂双层中的一类蛋白。它有一个根本性的矛盾:跨膜区段是疏水的(要跟脂双层的环境兼容),而亲水区段是亲水的(要在水相环境中发挥功能)。这种"两栖"特性使得跨膜蛋白在离开膜环境后很难保持可溶和正确折叠。一旦脱离了脂双层,疏水的跨膜区段暴露在水相中,蛋白就会聚集沉淀。
但偏偏跨膜蛋白又太重要了。已知的药物靶点中,超过60%是跨膜蛋白。G蛋白偶联受体(GPCR)一个家族就贡献了FDA批准药物靶点的三分之一以上。离子通道、转运蛋白、受体酪氨酸激酶等跨膜蛋白家族同样是新药研发的核心目标。所以不管多难搞,跨膜蛋白的研究都是绕不开的。
本文就来系统梳理跨膜蛋白从表达到纯化到结构解析的全流程技术,帮助你理解这个领域的技术挑战和解决方案。
二、跨膜蛋白的基本分类与结构特征
要理解跨膜蛋白,首先得知道它的分类和结构特点。根据跨膜方式的不同,膜蛋白分为三大类:整合膜蛋白(内在膜蛋白)、外周膜蛋白和脂锚定蛋白。跨膜蛋白属于整合膜蛋白中的一种,它的特点是贯穿整个脂双层,既有胞外区也有胞内区。
跨膜蛋白的跨膜结构主要有两种形式:α螺旋和β桶状结构。α螺旋型是最常见的,跨膜区段是一段约20个氨基酸的疏水α螺旋,每次跨膜就是一个螺旋。根据跨膜次数不同,分为单次跨膜和多次跨膜。单次跨膜蛋白如受体酪氨酸激酶、细胞因子受体等;多次跨膜蛋白中最著名的就是GPCR蛋白,七次跨膜(又叫7TM蛋白),还有十二次跨膜的一些转运蛋白。
β桶状结构主要存在于革兰氏阴性菌的外膜蛋白和线粒体外膜蛋白中,由多条β链组成一个桶状通道,每条β链约8到14个氨基酸。这种结构虽然不如α螺旋型常见,但在膜孔蛋白研究中很重要。
跨膜蛋白的疏水跨膜区段是其难以表达和纯化的根本原因。在表达系统中,跨膜区段的疏水性会导致翻译过程中核糖体在膜上停顿(原核系统)或者需要内质网的信号识别颗粒(真核系统)。在纯化过程中,跨膜区段需要去垢剂来维持可溶性,而去垢剂的选择和优化是一个非常经验性的过程。
跨膜蛋白还有一个特点是其功能依赖于膜环境。很多跨膜蛋白只有在脂双层中才能保持正确的构象和功能活性,脱离了膜环境后即使保持可溶也可能失去活性。这就给膜蛋白纯化提出了更高的要求:不仅要拿到可溶的蛋白,还要保持其功能活性。
三、跨膜区预测:生物信息学工具的应用
在开始跨膜蛋白的实验工作之前,跨膜区预测是第一步。通过生物信息学工具分析蛋白序列,预测跨膜区段的位置和数量,可以为后续的表达设计和纯化策略提供重要参考。
跨膜区预测的原理是分析蛋白序列中的疏水性分布。跨膜α螺旋通常是20到25个连续的疏水氨基酸,两侧是带电荷的氨基酸。常用的预测算法基于隐马尔可夫模型(HMM)或神经网络,不仅能预测跨膜区段的位置,还能预测拓扑结构(即跨膜区段的走向、N端在胞内还是胞外)。
常用的跨膜区预测工具有几个。TMHMM是最经典的工具,基于HMM模型,能预测跨膜螺旋的数量和拓扑结构。Phobius在TMHMM基础上增加了信号肽预测功能,能区分信号肽和跨膜区段,减少误判。TMHMM和Phobius都可以在ExPASy平台上在线使用。DeepTMHMM是较新的基于深度学习的工具,预测准确率更高。对于β桶状外膜蛋白,有专门的预测工具如BOCTOPUS和BETAWARE。
跨膜区预测的实际应用价值体现在几个方面。第一,在构建表达载体时,如果只需要表达可溶性区段(比如胞外域用于抗体制备),就需要根据跨膜区预测结果来设计截短体,去掉跨膜区段。第二,在多肽抗原设计时,要避开跨膜区段(太疏水,免疫效果差),选择亲水的胞外或胞内区段。第三,在评估跨膜蛋白的表达可行性时,跨膜次数越多,表达和纯化难度越大,需要做好心理准备和技术预案。
除了跨膜区预测,还有一些有用的生物信息学分析。比如用SignalP预测信号肽,用TargetP预测亚细胞定位,用CDD或InterPro搜索保守结构域。综合这些信息,可以在实验前就对目标蛋白有一个全面的认识,制定更合理的实验方案。
四、跨膜蛋白表达:挑战与策略选择
跨膜蛋白表达是整个跨膜蛋白研究中最具挑战性的环节之一。很多跨膜蛋白在大肠杆菌中根本表达不出来,或者表达出来全在包涵体里,没法用。即使是在真核系统中,多次跨膜蛋白的表达量也往往很低。这背后的原因前面提到了,跨膜区段的疏水性给翻译和膜插入带来了巨大的障碍。
跨膜蛋白表达需要选择合适的表达系统,不同的系统有不同的适用范围。
大肠杆菌表达系统。原核系统速度快、成本低,但对于多次跨膜蛋白来说效果不好。大肠杆菌缺乏内质网和合适的膜插入机制,跨膜区段无法正确插入膜中,容易形成包涵体。不过对于单次跨膜蛋白的胞外域,大肠杆菌还是可以用的。有时候也可以利用大肠杆菌的膜蛋白表达系统,比如把蛋白与膜靶向信号肽融合,让蛋白插入大肠杆菌内膜。
酵母表达系统。毕赤酵母和酿酒酵母有完整的内膜系统,能进行膜插入和部分翻译后修饰,是跨膜蛋白表达的一个好选择。特别是对于GPCR蛋白和离子通道,酵母系统已经有不少成功的案例。表达量虽然不如哺乳动物细胞,但成本更低、操作更简单。
哺乳动物细胞表达系统。HEK293和CHO细胞是跨膜蛋白表达的金标准。它们有完整的膜系统、翻译后修饰能力,能最大程度保证跨膜蛋白的正确折叠和功能。特别是对于人源的跨膜蛋白,在人源细胞中表达最能保持天然构象。缺点是成本高、周期长、表达量相对低。但通过优化启动子、信号肽、标签位置和密码子优化,可以提高表达效率。
昆虫细胞表达系统。利用杆状病毒载体在Sf9或Sf21细胞中表达,介于酵母和哺乳动物细胞之间,成本比哺乳细胞低,翻译后修饰能力比酵母好。在结构生物学研究中应用广泛,很多GPCR的冷冻电镜结构就是用昆虫细胞表达的蛋白做的。
无细胞蛋白表达系统。这是一个越来越受关注的选择。无细胞系统不需要活细胞,利用细胞裂解物中的翻译机器在试管中合成蛋白,可以通过添加去垢剂或脂质体来解决跨膜蛋白的溶解问题。对于难以在细胞中表达的跨膜蛋白,无细胞系统提供了一个替代方案。
跨膜蛋白表达中还有几个常用的优化策略。一是加促溶标签,比如MBP或GFP,帮助蛋白正确折叠和稳定。二是优化信号肽,用人源的信号肽替换原始信号肽,有时能显著提高分泌效率。三是降表达温度,低温下翻译速度慢,给蛋白更多时间正确折叠和膜插入。四是选择合适的细胞系,有些细胞系对特定类型的跨膜蛋白表达效果更好,需要筛选。
五、GPCR蛋白:最重要的跨膜蛋白家族
说到跨膜蛋白,就不能不提GPCR蛋白。G蛋白偶联受体是人体中最大的膜受体家族,编码基因超过800个,占人类基因组约4%。GPCR蛋白参与几乎所有的生理过程,从视觉、嗅觉到神经传递、免疫调节、代谢调控,都有它的身影。
GPCR蛋白的结构特征是七次跨膜α螺旋,N端在胞外,C端在胞内,胞外环和胞内环连接各个跨膜螺旋。配体(激素、神经递质、趋化因子等)结合在胞外侧,引起构象变化,激活胞内耦联的G蛋白(Gs、Gi、Gq等),进而触发下游信号通路。
GPCR蛋白是绝对的跨膜蛋白药物靶点之王。目前已知的FDA批准药物中,约34%以GPCR为靶点。从抗组胺药到β受体阻滞剂,从阿片类镇痛药到抗精神病药,无数常用药物的作用靶点都是GPCR。然而800多个GPCR中,只有约100个目前有药物靶向,剩下的600多个(包括很多孤儿受体)还是未开发的金矿。
GPCR蛋白的研究难点在于它是一个典型的多次跨膜蛋白,表达量低、纯化困难、结构不稳定。在膜环境中,GPCR需要特定的脂质成分来保持稳定(比如胆固醇对很多GPCR的稳定很重要)。脱离了合适的脂质环境,GPCR很容易变性失活。
近年来GPCR研究取得了重大突破,特别是冷冻电镜技术的发展使得越来越多的GPCR结构被解析出来。这些结构不仅帮助我们理解了GPCR的激活机制,也为基于结构的药物设计提供了基础。但挑战依然存在:GPCR是动态的,在不同构象状态下的结构差异很大,如何捕获和稳定特定构象状态仍是一个难题。
在跨膜蛋白表达方面,GPCR通常需要在哺乳动物细胞或昆虫细胞中表达,表达量往往只有每升培养液几毫克甚至更低。通过载体优化、密码子优化、信号肽替换、添加促溶标签等策略,可以在一定程度上提高表达量。有些GPCR还需要与下游信号蛋白共表达来帮助正确折叠和膜插入。
六、膜蛋白纯化:去垢剂的选择与优化
膜蛋白纯化与常规可溶性蛋白纯化的最大区别在于:需要使用去垢剂。去垢剂的作用是替代天然的脂质环境,包裹跨膜区段的疏水表面,使膜蛋白在水相中保持可溶。去垢剂的选择对膜蛋白纯化的成败至关重要。
常用的去垢剂有几大类。非离子型去垢剂是最常用的,包括DDM(n-十二烷基-β-D-麦芽糖苷)和DM(n-癸基-β-D-麦芽糖苷),它们对膜蛋白比较温和,是结构生物学研究中的首选。OG(辛基葡萄糖苷)也是一种常用的温和去垢剂。CHAPS是两性离子型去垢剂,常用于需要保持蛋白活性的纯化。SDS是离子型强变性去垢剂,一般只在变性条件下使用,不适合需要保持活性的膜蛋白。
膜蛋白纯化的流程一般是:细胞膜制备(通过细胞裂解和差速离心获取膜组分)→膜蛋白增溶(用去垢剂从膜上溶解下来)→亲和纯化(通常用His标签或FLAG标签)→离子交换或凝胶过滤精纯化。每个环节都有需要注意的细节。
膜制备是第一步,也是关键的一步。细胞裂解后,通过低速离心去除未破碎细胞和核,然后高速离心(100000g以上)沉淀膜组分。膜组分用含有去垢剂的缓冲液处理,让膜蛋白从膜上溶解下来。去垢剂的浓度要足够(通常是临界胶束浓度的1到2倍),但又不能太高否则会破坏蛋白活性。增溶的时间和温度也要控制,一般4度下30到60分钟。
增溶后的离心去除不溶物,上清就可以做亲和纯化了。与可溶性蛋白的亲和纯化不同,膜蛋白纯化的所有缓冲液中都需要保持一定浓度的去垢剂(通常低于增溶浓度),否则蛋白会析出。纯化过程中还要注意去垢剂可能导致填料非特异性吸附蛋白,需要优化洗涤条件。
去垢剂的选择没有万能公式,需要针对每个蛋白进行筛选。一般推荐先从DDM开始筛选,因为DDM在膜蛋白结构研究中成功率最高。如果DDM效果不好,再试其他去垢剂,如LMNG(比DDM更稳定)、OG、CHAPS等。筛选的标准是蛋白得率、纯度、单体比例和活性保持情况。
膜蛋白纯化的核心难点不在于层析技术本身,而在于保持蛋白在整个纯化过程中的稳定性和活性。去垢剂的选择就像给膜蛋白选一件合适的外衣——太大不好,太小也不好,刚刚好才行。
七、脂质体纳米颗粒:膜蛋白研究的新工具
传统膜蛋白纯化依赖去垢剂来维持可溶性,但去垢剂环境与天然脂双层毕竟不同,很多膜蛋白在去垢剂中会逐渐失活。脂质体纳米颗粒技术的出现为膜蛋白研究提供了一个更接近天然环境的解决方案。
这里说的脂质体纳米颗粒主要有两种形式:纳米磷脂盘(Nanodisc)和 amphipol(两亲性高分子)。
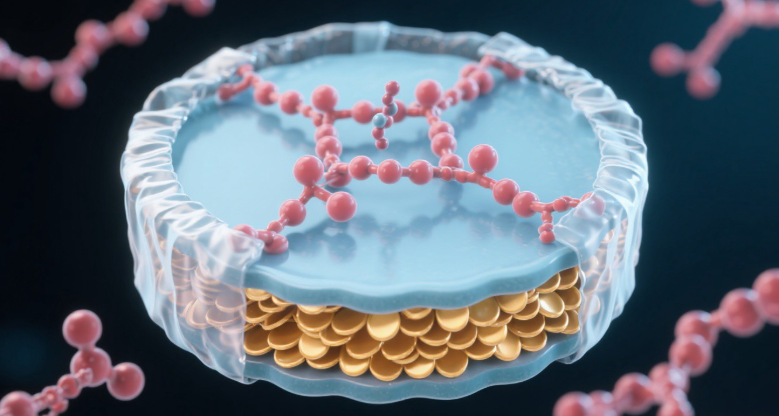
纳米磷脂盘是用膜骨架蛋白(MSP)包裹磷脂形成的一个盘状纳米结构,直径约10纳米,中间是一层磷脂双层,就像一个缩小版的细胞膜。膜蛋白可以嵌入到这个磷脂双层中,就像在天然膜中一样。纳米磷脂盘的好处是:蛋白处于真正的脂双层环境中(不是去垢剂胶束),稳定性大大提高;而且纳米磷脂盘是可溶的,大小均匀,可以用常规的层析方法纯化,也可以用于冷冻电镜结构分析。
纳米磷脂盘的制备流程一般是:纯化膜骨架蛋白→与磷脂和膜蛋白(在去垢剂中)混合→用生物珠吸附去除去垢剂→磷脂和骨架蛋白自发组装形成含膜蛋白的纳米磷脂盘→凝胶过滤纯化。这个过程需要优化磷脂与骨架蛋白的比例,以及膜蛋白与纳米磷脂盘的比例。
SMA(苯乙烯-马来酸酐共聚物)是另一种新兴的膜蛋白纳米颗粒技术。SMA可以直接插入细胞膜,把膜蛋白连同周围的天然脂质一起"剪"下来,形成SMA脂质颗粒(SMALP)。这种方法不需要去垢剂,直接从膜上获取膜蛋白,最大程度保持了蛋白的天然脂质环境。SMA技术的优势是操作简单,不需要预先纯化膜骨架蛋白,而且保持了天然脂质组成。
脂质体纳米颗粒技术在膜蛋白研究中应用越来越广泛。在功能研究方面,可以把膜蛋白嵌入纳米磷脂盘后做配体结合实验、酶活性测定等,蛋白活性保持得更好。在结构生物学方面,纳米磷脂盘是冷冻电镜分析的热门载体,因为它大小均匀、没有去垢剂干扰,特别适合单颗粒分析。在药物筛选方面,把GPCR蛋白嵌入纳米磷脂盘后做高通量筛选,比传统方法更接近生理条件。
当然脂质体纳米颗粒技术也有挑战。制备条件需要针对每个蛋白优化,组装效率有时不高,成本也不低。但随着技术的成熟和经验的积累,这些问题正在逐步解决。
八、膜蛋白结构解析:从X射线到冷冻电镜
膜蛋白结构解析一直是结构生物学中最具挑战性的领域之一。很长一段时间里,膜蛋白的结构解析进展缓慢,主要因为难以获得足够量、足够纯度、足够稳定的蛋白样品用于结晶。
在X射线晶体学时代,膜蛋白结构解析的瓶颈在于结晶。膜蛋白在去垢剂中难以形成有序的晶体,因为去垢剂的存在干扰了蛋白-蛋白之间的晶格接触。为此发展出了脂质立方相(LCP)结晶技术,通过在脂质立方相环境中让膜蛋白结晶,绕过了去垢剂的问题。LCP技术在GPCR结构解析中发挥了关键作用,2012年就有多个GPCR结构通过LCP方法解析出来。但LCP结晶仍然是一个低效的过程,需要大量的条件筛选。
冷冻电镜(Cryo-EM)技术的革命性发展彻底改变了膜蛋白结构解析的格局。冷冻电镜不需要结晶,只需要把蛋白快速冷冻在玻璃态冰中,通过电子显微镜成像和计算机图像处理来解析结构。对于膜蛋白来说,冷冻电镜有几个巨大优势:不需要结晶(这是最大的),需要的蛋白量少,可以解析多个构象状态,可以在脂质环境中解析(用纳米磷脂盘)。
近年来,冷冻电镜解析膜蛋白结构的成果爆发式增长。从GPCR到离子通道,从转运蛋白到膜复合物,越来越多以前无法结晶的膜蛋白结构被解析出来。分辨率也从早期的近原子分辨率提升到了原子分辨率水平。2018年和2020年的诺贝尔化学奖都与冷冻电镜相关技术有关,足见这一技术对结构生物学的革命性影响。
对于做膜蛋白研究的人来说,膜蛋白结构解析的意义不仅在于理解蛋白的工作机制,更在于为药物设计提供精确的靶点结构信息。有了高分辨率的结构,就可以做基于结构的药物设计,开发更特异、更高效的药物。这就是为什么各大药企都在投入巨资做跨膜蛋白的结构生物学研究。
当然膜蛋白结构解析还有很多挑战。样品制备仍然是瓶颈,特别是多次跨膜蛋白的纯化和稳定化。冷冻电镜的样品制备也需要优化,蛋白的取向分布、构象均一性等都会影响解析结果。但随着技术的不断进步,这些障碍正在被一个一个克服。
九、跨膜蛋白药物靶点:新药研发的金矿
前面多次提到跨膜蛋白药物靶点的重要性,这里详细说说为什么跨膜蛋白是新药研发的核心战场。
跨膜蛋白在药物靶点中的统治地位不是偶然的。跨膜蛋白位于细胞表面,是细胞与外界通讯的接口,控制着信号转导、物质运输、细胞识别等关键功能。很多疾病的发生发展都与跨膜蛋白的功能异常有关——受体过度激活、离子通道突变、转运蛋白异常等等。因此,靶向跨膜蛋白的药物可以直接调控疾病相关的信号通路。
从药物可及性的角度看,跨膜蛋白的胞外区可以直接接触血液中的药物分子,不需要药物进入细胞内。这使得跨膜蛋白成为小分子药物和生物制剂(如抗体药物)的理想靶点。
GPCR蛋白作为跨膜蛋白药物靶点的头号选手,前面已经说过了。除了GPCR,还有几个重要的跨膜蛋白药物靶点家族。
离子通道。钾通道、钠通道、钙通道等是心律调节、神经传递、肌肉收缩等过程的关键调节器。很多抗心律失常药、抗癫痫药、局部麻醉药的靶点都是离子通道。
转运蛋白。如SLC家族的溶质载体蛋白,控制着营养物质和药物的跨膜运输。抗癌药物的耐药性很多时候就与转运蛋白(如P-糖蛋白)的过度表达有关。
受体酪氨酸激酶(RTK)。如EGFR、HER2、VEGFR等,是肿瘤靶向治疗的核心靶点。很多靶向抗癌药(如吉非替尼、曲妥珠单抗)就是针对RTK开发的。
免疫检查点分子。如PD-1、PD-L1、CTLA-4等跨膜蛋白,是肿瘤免疫治疗的核心靶点。PD-1/PD-L1抗体的成功开发开创了肿瘤免疫治疗的新时代。
跨膜蛋白药物靶点开发的技术路径包括:靶点发现和验证(通过基因组学、蛋白质组学、CRISPR筛选等)、结构解析(冷冻电镜提供结构基础)、先导化合物筛选(基于结构的高通量筛选和虚拟筛选)、药物优化(结构指导的药物设计和优化)。整个流程中,跨膜蛋白的表达纯化和结构解析是技术瓶颈,也是价值最大的环节。
跨膜蛋白研究确实是蛋白科学中最难的领域之一,但同时也是价值最高的领域。从跨膜区预测的生物信息学分析,到跨膜蛋白表达的系统选择和优化,从膜蛋白纯化的去垢剂筛选,到脂质体纳米颗粒技术的应用,再到膜蛋白结构解析的冷冻电镜革命——每一项技术的进步都在推动我们更好地理解和利用跨膜蛋白。
对于科研人员来说,如果你在研究跨膜蛋白,首先要做好心理准备:这条路不好走,会有很多挫折。但也要看到,现在跨膜蛋白研究的技术手段比十年前强大了很多。表达系统有了更多选择,纯化方法更加成熟,结构解析不再是遥不可及的梦想。
选择跨膜蛋白表达系统时,要根据蛋白的类型和后续应用来决定:GPCR蛋白和离子通道优先考虑哺乳动物细胞或昆虫细胞系统,单次跨膜蛋白的胞外域可以用大肠杆菌或酵母,难以表达的跨膜蛋白可以尝试无细胞表达系统。做膜蛋白纯化时,去垢剂的筛选是关键,建议从DDM开始系统筛选。如果需要保持蛋白活性,考虑用脂质体纳米颗粒技术替代传统去垢剂。做结构解析时,冷冻电镜加纳米磷脂盘是目前的主流路线。
跨膜蛋白药物靶点开发的前景依然广阔。800多个GPCR中大部分还没有药物靶向,离子通道和转运蛋白中也有很多未开发的靶点。随着AlphaFold等AI结构预测工具的成熟,以及冷冻电镜技术的普及,我们有理由相信跨膜蛋白研究将迎来更快速的发展。
总之,跨膜蛋白虽然难搞,但正因为难搞,所以做出来才更有价值。希望这篇文章能为正在或即将从事跨膜蛋白研究的你提供一些实用的技术参考。